
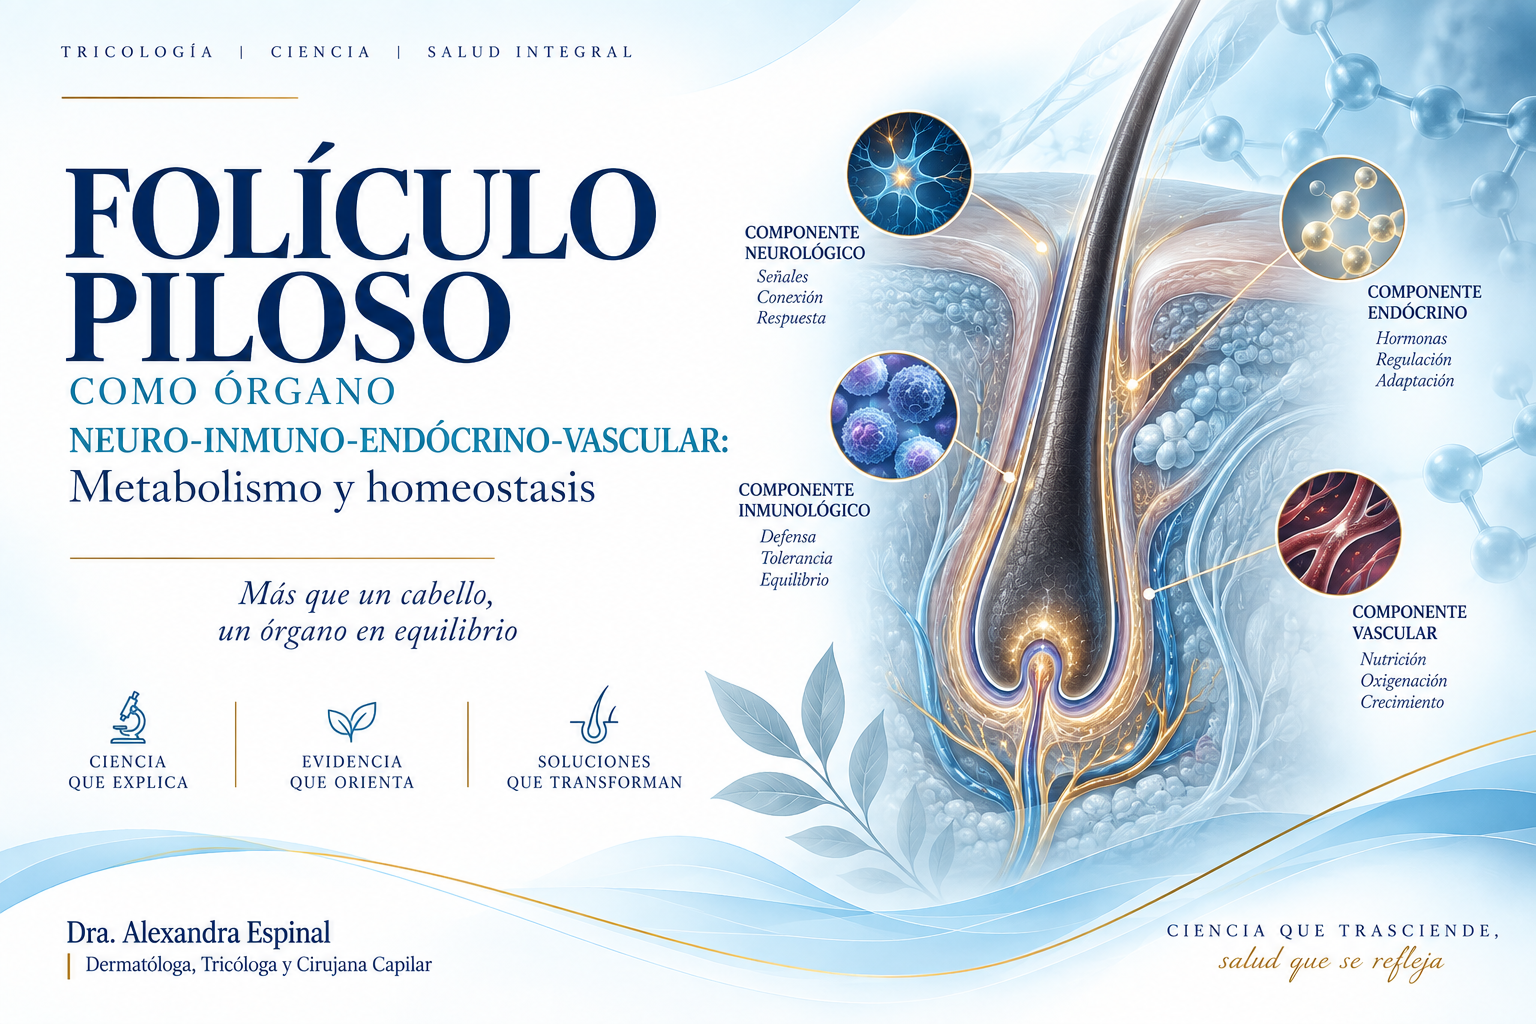
Folículo piloso como órgano neuro-inmuno-endócrino-vascular: metabolismo y homeostasis
Dra. Alexandra Espinal. Dermatotricóloga y Cirujana de restauración capilar
Artículo de revisión basado en la conferencia del IV Seminario Internacional del Cuerpo
Académico UDG-CA-1096, Ciencias de la Nutrición y Procesos Moleculares del Metabolismo. Septiembre, 2026
El cabello que observamos es el resultado visible de una biología mucho más profunda.
Cada tallo piloso emerge de un folículo que no funciona como una estructura pasiva ni como un simple productor de queratina, sino como un mini-órgano dinámico, cíclico y metabólicamente exigente. El folículo piloso integra señales nerviosas, inmunológicas, endócrinas, vasculares, nutricionales y metabólicas; interpreta el estado del organismo y modifica, en consecuencia, su proliferación, diferenciación, ciclo, pigmentación y capacidad regenerativa (Paus et al., 2014; Schneider et al., 2009).
Esta perspectiva obliga a ampliar la mirada tricológica. La evaluación del cabello no debería limitarse al tallo ni a la densidad folicular. Comprender la función del folículo exige estudiar el microambiente en el que vive, los sustratos que recibe, las vías mediante las cuales genera energía, su equilibrio oxidativo, las señales hormonales que interpreta, su relación con el sistema inmunológico y la microvasculatura que sostiene su extraordinaria demanda biosintética. “Comprender el metabolismo del folículo es comprender al organismo que lo sostiene.”
- El folículo piloso como mini-órgano dinámico
El folículo piloso es una unidad epitelio-mesenquimatosa altamente especializada que experimenta remodelación repetitiva a lo largo de la vida. Su ciclo comprende una fase de crecimiento activo o anágena, una fase de regresión o catágena, una fase de reposo o telógena y, desde una perspectiva funcional, una fase de liberación del tallo denominada exógena. Este comportamiento cíclico implica proliferación celular intensa, diferenciación, apoptosis programada, remodelación de la matriz extracelular, modificaciones vasculares y cambios inmunológicos coordinados (Schneider et al., 2009).
La matriz folicular durante la fase anágena contiene queratinocitos con una de las tasas proliferativas más elevadas del organismo. Esta actividad exige una provisión continua de energía, aminoácidos, lípidos, vitaminas, minerales y oxígeno. A la vez, el folículo debe conservar la integridad de sus células madre, regular el estrés oxidativo, mantener un microambiente inmunológico compatible con el crecimiento y responder a señales hormonales y nerviosas. Por ello, el metabolismo folicular no puede entenderse únicamente como producción de energía: es una plataforma de integración biológica.
- ¿Qué significa metabolismo folicular?
El metabolismo folicular puede definirse como la capacidad del folículo piloso para obtener, transformar y utilizar energía y sustratos con el fin de mantener su estructura, sostener su función, responder al microambiente y regenerarse. En términos prácticos, el proceso puede comprenderse en cuatro pasos: entrada de sustratos y señales; transformación mediante vías metabólicas; producción de energía y metabolitos bioactivos; y traducción de esa información en una respuesta biológica.
Entre los principales sustratos se encuentran el oxígeno, la glucosa, los aminoácidos, los lípidos y micronutrientes esenciales. A ellos se añaden señales hormonales, paracrinas y neuroendócrinas. La célula transforma estos elementos mediante glucólisis, metabolismo de aminoácidos, ciclo del ácido cítrico —también denominado ciclo de Krebs—, oxidación de ácidos grasos y fosforilación oxidativa. El resultado no es solamente Adenosín Trifosfato (ATP), la principal moneda energética celular, sino también metabolitos capaces de actuar como señales, equivalentes reductores, especies reactivas de oxígeno en concentraciones fisiológicas y cambios en el estado redox. La función final de esta maquinaria se expresa como proliferación de queratinocitos, síntesis de queratina, diferenciación, producción del tallo piloso, mantenimiento del ciclo, reparación y adaptación frente al estrés. Por ello, metabolismo y señalización son procesos inseparables.
- Sustratos metabólicos: ¿de qué se alimenta realmente el folículo?
La demanda energética del folículo cambia a lo largo del ciclo. Durante la fase anágena, la actividad proliferativa y biosintética es máxima; durante la fase catágena disminuye de forma abrupta y se activa un programa de regresión; durante la fase telógena predomina un estado de menor actividad metabólica. Esta plasticidad obliga al folículo a utilizar diferentes sustratos y a ajustar continuamente la producción de energía a sus necesidades.
Una de las demostraciones experimentales más importantes sobre el metabolismo del folículo humano fue publicada por Williams, Philpott y Kealey en 1993. Los autores estudiaron folículos pilosos humanos recién aislados capaces de mantener elongación del tallo en condiciones in vitro. El objetivo era determinar qué combustibles utilizaba realmente el folículo y cómo procesaba la glucosa y la glutamina. El hallazgo fue revelador: solo alrededor del 10 % de la glucosa utilizada por los folículos se oxidó completamente a dióxido de carbono. Una proporción importante fue desviada hacia metabolismo glucolítico, mientras que la glutamina también actuó como combustible metabólico relevante. Los autores caracterizaron al folículo humano como un tejido con metabolismo glucolítico aeróbico y glutaminolítico (Williams et al., 1993).
Este concepto es fundamental. La presencia de oxígeno no significa que toda la glucosa deba ser oxidada completamente en la mitocondria. Un tejido altamente proliferativo puede favorecer rutas que generan intermediarios necesarios para síntesis de nucleótidos, lípidos, aminoácidos y otras macromoléculas. De esta manera, el metabolismo folicular debe comprenderse no solo desde la eficiencia energética, sino también desde la necesidad de producir materia prima para construir células y tallo piloso.
- Mitocondria folicular: energía, señalización y resiliencia
La mitocondria es esencial para la homeostasis del folículo. A través del ciclo del ácido cítrico y la cadena respiratoria, participa en la generación de Adenosín Trifosfato mediante fosforilación oxidativa. Sin embargo, su función va mucho más allá de producir energía: regula apoptosis, estado redox, metabolismo intermediario, señales de calcio y adaptación celular.
Durante la fase anágena, las células de la matriz requieren energía para proliferar, sintetizar proteínas estructurales y mantener gradientes iónicos. Los aminoácidos y los ácidos grasos también pueden incorporarse al metabolismo mitocondrial y contribuir a la generación de intermediarios. La flexibilidad metabólica —la capacidad de utilizar distintas fuentes de combustible según la disponibilidad y la necesidad— constituye una característica relevante de la homeostasis celular.
- 5. Especies reactivas de oxígeno: señal fisiológica y daño oxidativo
Las especies reactivas de oxígeno (ROS, por sus siglas en inglés, reactive oxygen species) son moléculas derivadas del metabolismo oxidativo. Durante mucho tiempo fueron consideradas exclusivamente productos dañinos; hoy se reconoce que, en concentraciones fisiológicas, participan en señalización celular. El problema aparece cuando su producción supera la capacidad antioxidante de la célula y se establece estrés oxidativo.
El folículo dispone de sistemas antioxidantes enzimáticos y no enzimáticos. Entre ellos se encuentran la superóxido dismutasa, la catalasa y la glutatión peroxidasa, además de moléculas reductoras y sistemas de reparación. El equilibrio entre generación y neutralización de especies reactivas de oxígeno influye en la proliferación, diferenciación, envejecimiento celular, inflamación y la supervivencia. Por ello, el objetivo fisiológico no es eliminar todas las especies reactivas de oxígeno. Una estrategia de homeostasis redox busca conservar la señalización fisiológica evitando que el exceso oxidativo produzca daño de proteínas, lípidos, membranas y ácido desoxirribonucleico.
- Metabolismo como señal: lactato y células madre foliculares
Uno de los cambios conceptuales más interesantes de la biología metabólica moderna es comprender que los metabolitos no son únicamente productos finales. Algunas moléculas generadas durante el metabolismo actúan como señales capaces de modificar el destino celular.
La actividad de lactato deshidrogenasa impulsa la activación de células madre. Flores y colaboradores publicaron en Nature Cell Biology, en 2017, un estudio mecanístico realizado en modelos murinos que examinó el metabolismo de las células madre del folículo piloso. Estas células utilizaron metabolismo glucolítico y produjeron más lactato que otras células epidérmicas. La enzima lactato deshidrogenasa A (LDHA, lactate dehydrogenase A), responsable de favorecer la conversión de Piruvato a lactato, resultó crítica para su activación. Cuando los investigadores eliminaron genéticamente la lactato deshidrogenasa A, la activación de las células madre foliculares se vio impedida. En sentido contrario, al eliminar el transportador mitocondrial de Piruvato 1 (MPC1, mitochondrial pyruvate carrier 1) y favorecer así la producción de lactato, la activación de las células madre y el ciclo piloso se aceleraron (Flores et al., 2017).
El estudio no debe extrapolarse de forma automática al folículo humano, porque se trata de evidencia preclínica murina. Sin embargo, demuestra un principio biológico de enorme relevancia: El estado metabólico puede participar directamente en la decisión de una célula madre de permanecer quiescente o activarse. El lactato, por tanto, no debe interpretarse simplemente como un desecho de la glucólisis.
- Señalización celular, microambiente y ciclo folicular
El folículo existe dentro de un microambiente altamente organizado. Células epiteliales, papila dérmica, fibroblastos, células inmunológicas, nervios, vasos sanguíneos, glándula sebácea, matriz extracelular y células madre intercambian señales de manera continua. La comunicación puede ser autocrina, paracrina, endócrina, neurocrina e inmunológica.
Entre las vías moleculares que participan en el desarrollo, mantenimiento y regeneración folicular se encuentran Wingless/Integrated y beta-catenina (Wnt/beta- catenina), Sonic Hedgehog (Shh), proteínas morfogenéticas óseas (BMP, bone morphogenetic proteins), Notch, factores de crecimiento de fibroblastos (FGF, fibroblast growth factors) y factor de crecimiento transformante beta (TGF-beta, transforming growth factor beta). Estas rutas no funcionan como interruptores independientes; forman redes que controlan activación de células madre, proliferación, diferenciación, quiescencia y transición entre fases del ciclo (Lee & Tumbar, 2012). Esta integración explica por qué una misma intervención puede producir respuestas distintas según el estado del folículo. El resultado depende del momento del ciclo, la disponibilidad energética, la inflamación, las hormonas, la vascularización y la competencia metabólica de las células que reciben la señal.
- El folículo como órgano neurológico y neuroendócrino
El folículo piloso está ricamente inervado y responde a neurotransmisores, neuropéptidos y señales relacionadas con el estrés. Sustancia P, péptido relacionado con el gen de la calcitonina (CGRP, calcitonin gene-related peptide), noradrenalina y otros mediadores pueden modificar la inflamación, la actividad mastocitaria, la microcirculación y el ciclo folicular. La literatura neuroendocrina ha consolidado la idea del folículo comofuente y blanco de neuromediadores capaces de regular crecimiento, pigmentación, inmunidad, células madre y metabolismo energético (Paus et al., 2014).
En 2005, Ito y colaboradores proporcionaron una de las demostraciones más elegantes de autonomía neuroendocrina folicular. Utilizaron folículos pilosos humanos de cuero cabelludo microdisecados y mantenidos en organocultivo. Es decir, folículos separados del hipotálamo, la hipófisis, la glándula suprarrenal, la circulación sistémica y las conexiones nerviosas. Los folículos respondieron a la hormona liberadora de corticotropina (CRH, corticotropin-releasing hormone) aumentando la transcripción de proopiomelanocortina (POMC, proopiomelanocortin) y la presencia de hormona adrenocorticotrópica (ACTH, adrenocorticotropic hormone) y hormona estimulante de melanocitos alfa (alpha-MSH, alpha-melanocyte-stimulating hormone). Además, secretaron cortisol al medio de cultivo, y esta secreción aumentó tras la estimulación con hormona liberadora de corticotropina. La hidrocortisona, a su vez, redujo la expresión folicular de la hormona liberadora de corticotropina, demostrando un circuito de retroalimentación semejante al eje hipotálamo-hipófisis-suprarrenal clásico (Ito et al., 2005).
El hallazgo permite afirmar que el folículo humano posee un equivalente funcional periférico del eje hipotálamo-hipófisis-suprarrenal. No se trata simplemente de que responda al cortisol circulante, sino que puede generar localmente elementos de una respuesta neuroendocrina al estrés.
- El folículo como órgano inmunológico: privilegio, vigilancia y tolerancia
El crecimiento folicular requiere un equilibrio inmunológico particular. Durante la fase anágena, determinadas regiones del folículo presentan un estado de privilegio inmunológico relativo, caracterizado por una reducción de la presentación antigénica y por señales inmunorreguladoras locales. Este privilegio no significa ausencia de inmunidad, sino una regulación activa destinada a limitar respuestas potencialmente destructivas contra estructuras foliculares (Paus et al., 2003; Bertolini et al., 2020).
Entre los mecanismos descritos se encuentran una expresión reducida del complejo mayor de histocompatibilidad de clase I y clase II en determinados compartimentos, señales como CD200, la hormona estimulante de melanocitos alfa y factor de crecimiento transformante beta, así como la participación de células T reguladoras y otras poblaciones inmunológicas.
En 2004, Ito y colaboradores utilizaron folículos humanos anágenos en organocultivo para estudiar de manera experimental el privilegio inmunológico dependiente del complejo mayor de histocompatibilidad de clase I. El interferón gamma indujo expresión ectópica del complejo mayor de histocompatibilidad de clase I en la matriz folicular, acompañada por aumento de beta-2-microglobulina y del transportador asociado con el procesamiento de antígenos 2. Posteriormente, señales inmunomoduladoras producidas localmente —entre ellas hormona estimulante de melanocitos alfa, factor de crecimiento similar a la insulina tipo 1 y factor de crecimiento transformante beta 1— redujeron o normalizaron la expresión inducida por interferón gamma (Ito et al., 2004). El estudio demostró que el privilegio inmunológico folicular es un estado biológicamente regulado y potencialmente reversible.
En alopecia areata, la literatura posterior ha mostrado que el colapso de este privilegio constituye un componente central de la fisiopatología, con infiltración de linfocitos T citotóxicos y células asesinas naturales que expresan el receptor activador NKG2D (natural killer group 2, member D) alrededor de folículos afectados (Bertolini et al., 2020). Esto ayuda a explicar por qué el folículo debe ser considerado un órgano inmunológicamente activo.
- El folículo como órgano endócrino
El folículo piloso es simultáneamente blanco, metabolizador y, para determinadas señales, productor local de mediadores hormonales. Andrógenos, estrógenos, hormonas tiroideas, cortisol, melatonina, prolactina y factores de crecimiento pueden modificar ls proliferación, diferenciación, pigmentación, metabolismo y el ciclo. La sensibilidad hormonal depende del compartimento folicular, el sexo, la localización anatómica y el contexto biológico.
Los andrógenos constituyen el ejemplo clásico de respuesta dependiente del sitio: pueden favorecer crecimiento en determinadas áreas y promover miniaturización en folículos genéticamente susceptibles del cuero cabelludo. El factor de crecimiento similar a la insulina tipo 1 (IGF-1, insulin-like growth factor 1) participa en señales de crecimiento y supervivencia. La melatonina posee acciones cronobiológicas, antioxidantes e inmunomoduladoras. Las hormonas tiroideas, por su parte, ofrecen un ejemplo especialmente claro de la conexión entre endocrinología y bioenergética folicular.
Vidali y colaboradores estudiaron folículos humanos de cuero cabelludo mantenidos en organocultivo y evaluaron el efecto de componentes del eje hipotálamo-hipófisis- tiroides. Analizaron la hormona liberadora de tirotropina (TRH, thyrotropin-releasing hormone), la hormona estimulante de la tiroides o tirotropina (TSH, thyroid-stimulating hormone), triyodotironina (T3) y la tiroxina (T4). Todos los componentes estudiados aumentaron la expresión de la subunidad 1 de la Citocromo C oxidasa codificada por ADN mitocondrial (MTCO1), el factor de transcripción mitocondrial A (TFAM, mitochondrial transcription factor A) y porina.
También estimularon la actividad de los complejos I y IV de la cadena respiratoria y la biogénesis mitocondrial. La triyodotironina y la tiroxina redujeron la formación de especies reactivas de oxígeno y aumentaron sistemas antioxidantes; además, determinadas hormonas del eje incrementaron la producción de Adenosín Trifosfato en queratinocitos foliculares (Vidali et al., 2014).
La importancia de este estudio radica en que lleva la endocrinología hasta el nivel bioenergético. La relación entre tiroides y cabello no es solamente una asociación clínica, sino, que existe evidencia experimental de que señales tiroideas pueden modificar directamente la función mitocondrial, la producción de energía y el estado redox del folículo humano.
- El folículo como órgano vascular
El folículo piloso presenta una relación dinámica con la microvasculatura. Durante el crecimiento anágeno aumentan las necesidades de oxígeno, nutrientes y señales circulantes; paralelamente, la red vascular perifolicular se remodela. La perfusión no debe interpretarse únicamente como una tubería de suministro: el endotelio también produce señales paracrinas y participa en la regulación del microambiente.
Entre los mediadores más estudiados se encuentra el factor de crecimiento endotelial vascular (VEGF, vascular endothelial growth factor), potente regulador de angiogénesis. La angiogénesis folicular es cíclica y acompaña las modificaciones estructurales del folículo.
En 2001, Yano, Brown y Detmar utilizaron un modelo murino para estudiar el papel funcional del factor de crecimiento endotelial vascular. La sobreexpresión de este factor en queratinocitos epidérmicos aumentó la vascularización perifolicular, se asoció con folículos de mayor tamaño y favoreció el crecimiento del pelo. El bloqueo de la señal produjo efectos opuestos (Yano et al., 2001). Aunque se trata de evidencia preclínica murina, el estudio demuestra un principio importante: La microvasculatura forma parte de la regulación funcional del crecimiento folicular. Por tanto, oxigenación, perfusión, angiogénesis y comunicación endotelio-folículo deben incorporarse a la visión metabólica del folículo.
- Del metabolismo sistémico al metabolismo del folículo
El folículo no vive aislado del organismo. El estado metabólico sistémico modifica la disponibilidad de combustible, hormonas, citocinas, micronutrientes y oxígeno que alcanzan el microambiente folicular. Esta relación permite entender por qué trastornos endocrinos, pérdidas ponderales rápidas, inflamación sistémica, alteraciones nutricionales y cambios metabólicos pueden expresarse clínicamente como modificación del ciclo o aumento de la caída.
La insulina y el factor de crecimiento similar a la insulina tipo 1 interactúan con vías de señalización relacionadas con crecimiento, supervivencia y síntesis. El tejido adiposo es un órgano endócrino que produce adipocinas, entre ellas leptina y adiponectina, capaces de modificar el entorno metabólico.
El cortisol sistémico y local participa en respuestas al estrés. Las hormonas tiroideas modifican bioenergética y ciclo. Las citocinas inflamatorias pueden alterar el microambiente y favorecer una transición desde la homeostasis hacia la disfunción.
Esta visión no implica que una alteración metabólica sistémica produzca necesariamente una alopecia específica. Significa que el folículo actúa como un biosensor susceptible a cambios del entorno y que la interpretación clínica debe integrar la patología folicular primaria con el contexto sistémico del paciente.
- Nutrición de precisión: suficiencia, no megadosificación
El folículo requiere sustratos para producir energía y construir queratina, membranas, ácidos nucleicos y sistemas enzimáticos. La proteína dietaria aporta aminoácidos esenciales; el hierro participa en múltiples procesos celulares y en el transporte sistémico de oxígeno; el zinc interviene en síntesis de ácido desoxirribonucleico y reparación; la vitamina D participa en regulación inmunológica y biología folicular; vitaminas del complejo B y otros micronutrientes actúan como cofactores metabólicos. Sin embargo, la relación entre nutrición y cabello exige prudencia. La presencia de una función biológica para un nutriente no significa que suplementarlo por encima de las necesidades fisiológicas mejore el crecimiento capilar.
Las revisiones disponibles muestran asociaciones entre determinadas deficiencias y alopecias no cicatriciales, pero también heterogeneidad y resultados inconsistentes para varios micronutrientes (Almohanna et al., 2019; Wang et al., 2024). Por ello, la nutrición de precisión debe partir de historia clínica, patrón dietario, contexto de pérdida de peso, comorbilidades y estudios de laboratorio seleccionados según riesgo. El objetivo es identificar y corregir insuficiencias reales, no administrar megadosis empíricas.
En efluvio telógeno, revisiones recientes han encontrado asociaciones entre niveles más bajos de ferritina y vitamina D y la presencia de la enfermedad, aunque la heterogeneidad de los estudios obliga a interpretar los resultados dentro del contexto clínico individual (Ahmed et al., 2026).
- Agonistas del receptor del péptido similar al glucagón tipo 1 y caída
capilar
La expansión del uso de medicamentos dirigidos al receptor del péptido similar al glucagón tipo 1 ha introducido una nueva pregunta en tricología: -Se asocia a caída de cabello?
Los agonistas del receptor del péptido similar al glucagón tipo 1 (GLP-1RA, glucagon-like peptide-1 receptor agonists) y moléculas con actividad incretínica relacionada se utilizan para diabetes mellitus tipo 2, obesidad y control ponderal. En la práctica clínica y en sistemas de farmacovigilancia se ha observado una señal de caída capilar durante su uso, especialmente con semaglutida y tirzepatida.
Una revisión sistemática publicada por Branyiczky y colaboradores en 2026 examinó la evidencia disponible sobre pérdida y recrecimiento del cabello asociados con estos fármacos. Otras revisiones recientes han señalado que semaglutida y tirzepatida concentran parte importante de las señales notificadas y que, cuando el subtipo se especifica, se describen principalmente formas no cicatriciales, incluido efluvio telógeno, además de alopecia androgenética en algunos estudios (Branyiczky et al., 2026; Gupta
et al., 2026).
Más recientemente, Cheng y Chang publicaron en 2026 una revisión sistemática y metaanálisis de nueve estudios intervencionales que incluyeron 4,114 usuarios de agonistas del receptor del péptido similar al glucagón tipo 1. El análisis agrupado encontró una asociación estadísticamente significativa con mayor riesgo de caída capilar frente a placebo y una tasa de eventos cercana al 3.9 % en el análisis de un solo brazo (Cheng & Chang, 2026). Este hallazgo fortalece la existencia de una señal clínica, pero no demuestra por sí mismo el mecanismo biológico responsable.
¿Efecto farmacológico directo o consecuencia de una transición metabólica acelerada?
Aquí es indispensable separar asociación de causalidad. Actualmente no existe evidencia suficiente para afirmar que los agonistas del receptor del péptido similar al glucagón tipo 1 produzcan toxicidad directa sobre el folículo humano ni que un receptor folicular funcional explique por sí solo la alopecia observada.
Una hipótesis clínicamente plausible es que, en determinados pacientes, la reducción del apetito y de la ingesta calórica, la pérdida ponderal rápida, los cambios en disponibilidad proteica y micronutricional, y la modificación de insulina, factor de crecimiento similar a la insulina tipo 1 y adipocinas generen una transición metabólica suficientemente intensa para precipitar un efluvio telógeno. Este mecanismo es coherente con la fisiología conocida del efluvio asociado a pérdida rápida de peso, pero todavía debe considerarse una explicación plausible y no una causalidad demostrada para todos los casos.
En la consulta, la aparición de caída durante tratamiento incretínico requiere evaluar velocidad y magnitud de pérdida ponderal, ingesta proteica, estado nutricional, función tiroidea, ferritina y otros micronutrientes según riesgo, medicamentos concomitantes y patrón tricoscópico. Suspender automáticamente un tratamiento metabólico beneficioso sin estudiar otras causas puede ser tan inadecuado como ignorar la señal capilar.
- Medicina regenerativa capilar: el microambiente importa
La medicina regenerativa suele enfocarse en el estímulo: plasma rico en plaquetas, fibrina rica en plaquetas, fotobiomodulación con láser de baja potencia, microneedling, factores de crecimiento, productos derivados de células y otras estrategias. Sin embargo, desde una perspectiva metabólica surge una pregunta más profunda: ¿Podemos esperar una respuesta regenerativa óptima si el microambiente que recibe el estímulo permanece alterado?
La respuesta biológica depende de la competencia del tejido. Un folículo con adecuada perfusión, disponibilidad energética, suficiencia nutricional, equilibrio inmunológico, señalización hormonal apropiada y capacidad mitocondrial funcional posee condiciones distintas a un folículo expuesto a inflamación persistente, estrés oxidativo intenso, déficit de sustratos o disfunción sistémica no corregida. Esto no significa que toda terapia regenerativa requiera “normalizar” cada biomarcador antes de tratar, ni que optimizar el metabolismo sustituya las terapias etiológicas. Significa que la respuesta regenerativa debe interpretarse dentro del terreno biológico en el que se aplica. La medicina regenerativa capilar más racional integra diagnóstico, biología folicular, evidencia de la intervención y corrección de factores modificables relevantes.
En este contexto también es importante diferenciar terapias con evidencia clínica establecida de tecnologías emergentes. Por ejemplo, el plasma rico en plaquetas y la fotobiomodulación cuentan con una base clínica creciente para indicaciones seleccionadas, mientras que el uso de exosomas y productos celulares en alopecias continúa siendo un campo en desarrollo que requiere estandarización, caracterización del producto, estudios controlados y evaluación regulatoria antes de asumir equivalencia terapéutica.
- Medicina folicular de precisión: del diagnóstico al fenotipo biológico
La medicina de precisión aplicada a tricología busca integrar dos dimensiones. La primera es el fenotipo folicular: patrón de alopecia, densidad, diámetro, miniaturización, fase del ciclo, inflamación, calidad del tallo y hallazgos tricoscópicos. La segunda es el fenotipo sistémico: estado hormonal, metabólico, nutricional, inflamatorio, genético y farmacológico.
La unión de ambos niveles permite formular preguntas más útiles. No solamente “¿qué alopecia tiene este paciente?”, sino también “¿qué mecanismos predominan en este paciente en este momento?”. Dos personas con el mismo diagnóstico clínico pueden presentar contribuciones diferentes de andrógenos, inflamación, déficit nutricional, estrés, disfunción tiroidea, pérdida ponderal o alteración del microambiente.
La medicina folicular de precisión no debe convertirse en una acumulación indiscriminada de pruebas de laboratorio o suplementos. Su valor está en seleccionar variables que tengan plausibilidad biológica, evidencia y capacidad real de modificar decisiones clínicas. La precisión no consiste en medir más; consiste en medir mejor, interpretar mejor y tratar de manera más individualizada.
- Integración: cuatro sistemas, un destino metabólico
La visión neuro-inmuno-endócrino-vascular permite comprender que los grandes sistemas reguladores convergen sobre un mismo territorio biológico. El sistema nervioso aporta neurotransmisores, neuropéptidos y señales de estrés. El sistema inmunológico determina vigilancia, tolerancia e inflamación. El sistema endócrino comunica el estado hormonal y metabólico del organismo. El sistema vascular entrega oxígeno, nutrientes y señales circulantes, y participa activamente en angiogénesis y comunicación endotelial.
Estas señales convergen sobre la maquinaria metabólica del folículo. La mitocondria, la glucólisis, el estado redox, los metabolitos, las vías de señalización y las células madre traducen esa información en decisiones biológicas: proliferar, diferenciarse, permanecer quiescentes, entrar en regresión, reparar o regenerar. Por eso, la homeostasis folicular no puede reducirse a una molécula ni a una sola vía: Es un estado emergente producido por la integración dinámica de múltiples sistemas.
Conclusión
El folículo piloso es un mini-órgano metabólicamente activo que recibe información del organismo y, al mismo tiempo, posee sistemas locales capaces de producir y modular señales. Utiliza glucosa y glutamina de manera particular; adapta su función mitocondrial; genera y neutraliza especies reactivas de oxígeno; emplea metabolitos como señales; protege determinados compartimentos mediante privilegio inmunológico; sintetiza cortisol localmente; responde a hormonas tiroideas a nivel mitocondrial y modifica su crecimiento en relación con la microvasculatura.
Los estudios de Williams, Philpott y Kealey; Flores y colaboradores; Ito y colaboradores; Vidali y colaboradores; y Yano, Brown y Detmar no representan datos aislados. En conjunto, sostienen una idea integradora: El folículo piloso es un órgano en el que metabolismo, señalización, inmunidad, endocrinología, neurobiología y vascularizaciónse encuentran.
Esta perspectiva también cambia la práctica clínica. El cabello visible es el resultado final de procesos que ocurren mucho más profundo. Ante una alteración capilar, debemos diagnosticar la enfermedad folicular, pero también preguntarnos por el terreno metabólico, hormonal, inmunológico, vascular y nutricional en el que esa enfermedad se está expresando.
“El cabello que vemos es la expresión visible de una biología que ocurre mucho más profundo.”
Comprender el metabolismo del folículo no significa atribuir toda alopecia a un problema metabólico. Significa reconocer que la capacidad del folículo para crecer, adaptarse y regenerarse depende de la integración de su biología local con el estado general del organismo. Ese es el punto de encuentro entre tricología, nutrición, endocrinología, inmunología, medicina regenerativa y medicina de precisión.
Referencias bibliográficas
Almohanna, H. M., Ahmed, A. A., Tsatalis, J. P., & Tosti, A. (2019). The role of vitamins and minerals in hair loss: A review. Dermatology and Therapy, 9(1), 51–70. https://doi.org/10.1007/s13555-018-0278-6
Ahmed, A., Alali, A., Alahmadi, M., Alghamdi, S., Khawaji, Z., Humedi, A., & Alqurashi, S. (2026). Association between serum trace elements and telogen effluvium: Asystematic review and meta-analysis. Skin Appendage Disorders. https://doi.org/10.1159/000550921
Bertolini, M., McElwee, K., Gilhar, A., Bulfone-Paus, S., & Paus, R. (2020). Hair follicle immune privilege and its collapse in alopecia areata. Experimental Dermatology. https://doi.org/10.1111/exd.14155
Branyiczky, M. K., Lowe, M. S., McMullen, E., Donovan, J., & Khosravi-Hafshejani, T. (2026). Effects of GLP-1 receptor agonists on hair loss and regrowth: A systematic review. International Journal of Dermatology, 65(5), 1030–1032. https://doi.org/10.1111/ijd.70133
Cheng, P.-L., & Chang, H.-C. (2026). Glucagon-like peptide-1 receptor agonists and hair loss: A systematic review and meta-analysis. Diabetes Research and Clinical Practice, 237, 113333. https://doi.org/10.1016/j.diabres.2026.113333
Gupta, A. K., Teasell, E. M., Economopoulos, V., & Mirmirani, P. (2026). GLP-1 therapies and hair loss: A systematic review of current evidence and implications for counseling. Science Progress, 109(2), 368504261444578. https://doi.org/10.1177/00368504261444578
Flores, A., Schell, J., Krall, A. S., et al. (2017). Lactate dehydrogenase activity drives hair follicle stem cell activation. Nature Cell Biology, 19(9), 1017–1026. https://doi.org/10.1038/ncb3575
Ito, N., Ito, T., Kromminga, A., et al. (2005). Human hair follicles display a functional equivalent of the hypothalamic-pituitary-adrenal axis and synthesize cortisol. FASEB Journal, 19(10), 1332–1334. https://doi.org/10.1096/fj.04-1968fje
Ito, T., Ito, N., Bettermann, A., Tokura, Y., Takigawa, M., & Paus, R. (2004). Collapse and restoration of MHC class-I-dependent immune privilege: Exploiting the human hair follicle as a model. The American Journal of Pathology, 164(2), 623–634. https://doi.org/10.1016/S0002-9440(10)63151-3
Wang, R., Lin, J., Liu, Q., Wu, W., Wu, J., & Liu, X. (2024). Micronutrients and androgenetic alopecia: A systematic review. Molecular Nutrition & Food Research, 68(22), e2400652. https://doi.org/10.1002/mnfr.202400652
Lee, J., & Tumbar, T. (2012). Hairy tale of signaling in hair follicle development and cycling. Seminars in Cell & Developmental Biology. https://pubmed.ncbi.nlm.nih.gov/22939761/
Paus, R., Arck, P., & Tiede, S. (2008). (Neuro-)endocrinology of epithelial hair follicle stem cells. Molecular and Cellular Endocrinology, 288(1–2), 38–51. https://doi.org/10.1016/j.mce.2008.02.023
Paus, R., Ito, N., Takigawa, M., & Ito, T. (2003). The hair follicle and immune privilege. Journal of Investigative Dermatology Symposium Proceedings, 8(2), 188–194. https://doi.org/10.1046/j.1087-0024.2003.00807.x
Paus, R., Langan, E. A., Vidali, S., Ramot, Y., & Andersen, B. (2014). Neuroendocrinology of the hair follicle: Principles and clinical perspectives. Trends in Molecular Medicine, 20(10), 559–570. https://doi.org/10.1016/j.molmed.2014.06.002
Schneider, M. R., Schmidt-Ullrich, R., & Paus, R. (2009). The hair follicle as a dynamic miniorgan. Current Biology, 19(3), R132–R142. https://doi.org/10.1016/j.cub.2008.12.005
Vidali, S., Knuever, J., Lerchner, J., et al. (2014). Hypothalamic-pituitary-thyroid axis hormones stimulate mitochondrial function and biogenesis in human hair follicles. Journal of Investigative Dermatology, 134(1), 33–42. https://doi.org/10.1038/jid.2013.286
Williams, R., Philpott, M. P., & Kealey, T. (1993). Metabolism of freshly isolated human hair follicles capable of hair elongation: A glutaminolytic, aerobic glycolytic tissue. Journal of Investigative Dermatology, 100(6), 834–840. https://doi.org/10.1111/1523-1747.ep12476744
Yano, K., Brown, L. F., & Detmar, M. (2001). Control of hair growth and follicle size by VEGF-mediated angiogenesis. Journal of Clinical Investigation, 107(4), 409–417. https://doi.org/10.1172/JCI11317
